
BraiNNの内部:解剖学、ダイナミクス、電場、およびEEGを1つのワークフローで統合
IT’IS財団著全脳スケール。頭皮脳波(EEG)は、主に個々のスパイクではなく、 大規模なニューロン集団のシナプス後活動の総和を反映している。 ニューラルマスモデルは、平均膜電位と発火率を通じて、このスケールでの活動を記述し、各集団は、その局所的なダイナミクスとネットワークから受け取る入力に従って変化する。 同じクラスのモデルが、 『The Virtual Brain』において発作ダイナミクスのニューラルマスモデルを実行する「Virtual Epileptic Patient」の基盤となっている [1, 2]。 ある遡及的研究において、その推定値は臨床的に定義されたてんかん原性 ネットワークと一致しており、特に切除後に発作が消失した患者において最も密接に一致していた [3]。
BraiNNは2つの解像度をサポートしている。領域レベルのネットワークでは、単一のニューラルマスノードが各 解剖学的領域を表す。皮質表面ネットワークでは、(場合によっては個人化された) 皮質メッシュの各頂点が完全なノードを持ち、疎で測地線距離に依存する接続性が 局所的な相互作用を記述し、長距離の相互作用は領域レベルの構造的 接続性から継承される。これにより、領域内の空間的な詳細を保持しつつ、領域間の解剖学的に意味のある 接続も維持される。
ニューラルマスモデル。各ノードは、皮質カラムを表すJansen-Ritモデル[6]であり、 錐体投射ニューロンおよび 興奮性・抑制性介在ニューロンの集団で構成される(ソルバーライブラリは他のモデルバリエーションもサポートしている)。 モデルの状態変数は平均膜電位を表しており、シグモイド関数によって 膜電位が発火率に変換される。 ノードの出力、すなわちピラミッド細胞集団の 興奮性および抑制性シナプス後電位との差は、他の ノード(後述)に渡され、等価な電流双極子に変換された後、仮想的なEEG信号を生成するために用いられる。
本モデルは文献[6]に基づく標準的なパラメータ設定を採用しており、主要なパラメータはユーザーが設定可能です: 興奮性および抑制性のシナプスゲインは、各カラム内の興奮と抑制のバランスを決定します; グローバル結合強度は長距離入力の規模を決定し、局所表面結合強度は隣接する表面ノード間の相互作用を制御します;また、確率微分方程式のバリエーションにおいては、ノイズスケーリング係数が文献に基づくノイズ構造 [10] に乗算されます。 これらのパラメータを変化させることで、研究者は 局所的なリズム、領域間の同期、およびシミュレーション信号のノイズレベルに対する感度を調査することができる。
接続性と遅延。各ノードへの長距離入力は、他の領域からの遅延した 出力の重み付き和であり、表面ネットワークにおいては、各領域に割り当てられた表面ノードの ピラミッド細胞出力の平均値となる。 重みは拡散トラクトグラフィーから導出された構造的接続性に基づいており、 遅延はトラクトの長さと仮定された伝導速度に基づいています。グローバルな結合強度が、 この重み付き和にスケールを適用します。
活動からEEGへ。シミュレーションされた皮質活動は、リード・フィールド行列の重み付けに従って頭皮電位に寄与する: 各皮質ソースは、局所的な皮質表面に垂直な等価電流双極子として表現され、 この行列は双極子モーメントを電極電圧にマッピングする。 Sim4Lifeは、Plonseyの相互性定理[11]を用いてリード場を計算する:低周波電磁気シミュレーションにより、各EEG電極と共通基準点との間に単位電流を印加し、各皮質頂点における結果として生じる場の法線成分が、その電極のリード場重みとなる。 刺激場とEEGリード場 は同じ頭部モデルと電磁気学の法則を使用するため、両方の計算で解剖学的構造、組織 特性、および座標系が共有される。
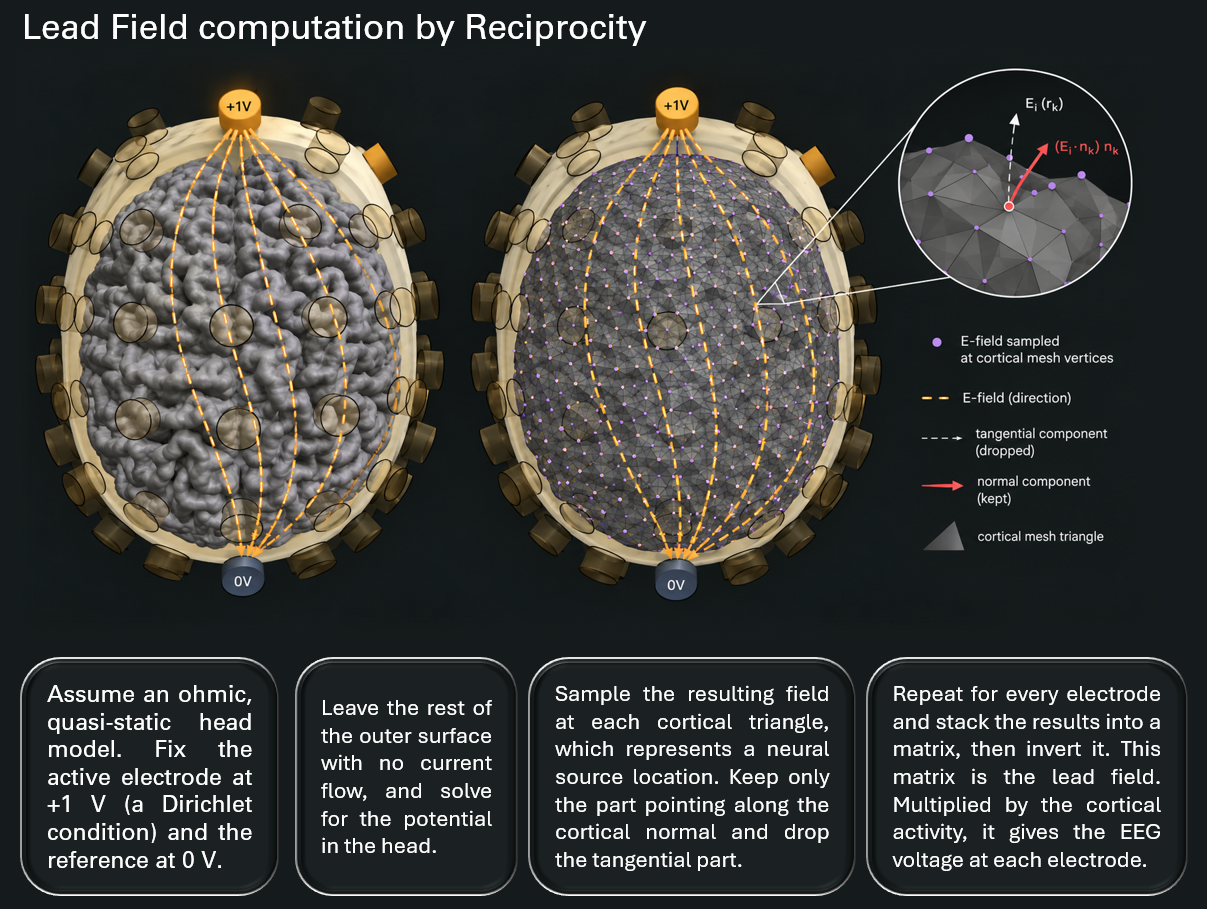 相互性に基づくリード場:電極と基準点間の単位電流は
頭部モデル内に電界を生成する。その皮質表面における法線成分が、
シミュレーションされた皮質活動をその電極に投影するための重みを提供する。 同じ頭部モデルが
刺激場の計算にも使用される。
場から入力へ。刺激場は、λE∥結合項 [7 – 9] を通じてネットワークに入る: モデル化された皮質カラムに平行な(すなわち、皮質表面に垂直な)電界成分は、 集団固有の係数 λ によってスケーリングされる。その結果は、電界誘起の 分極として、各集団の平均膜電位に加算される。 V10.0では、この電界誘発寄与は時間的に一定である。時間変動する刺激への対応は、 今後のリリースで予定されている。 電場がどのようにして ニューロンの集団全体の挙動に反映されるかは、依然として未解決の研究課題である。したがって、結合モデルは引き続き さらなる調査の対象となる。
数値計算エンジン。BraiNNはJAXで実装されており、積分ループ、ネットワーク結合、 確率的ノイズ、およびモニタリングがまとめてコンパイルされているため、同じモデル定義をCPU、GPU、または テンソル処理ユニット上で実行できます。 ジョイント配列は、ノード間およびパラメータセット、初期条件、あるいはノイズの実現値のバッチに対する演算をベクトル化します。
GPU上では、BraiNNは一般的に使用されるCPUベースのシミュレータよりも数桁速く全脳シミュレーションを実行します。 プレプリントのベンチマーク[5]では、NVIDIA RTX 3090 GPU上で測定した結果、32コアのAMD Ryzen Threadripper 3970X CPU上の「The Virtual Brain」と比較して、68領域からなる領域レベルのネットワークは約35倍高速に実行され、4.4kノードからなる皮質表面 ネットワーク(4.4kノード)では約90倍の高速化が確認された。実行時間は250領域までのネットワークサイズではほとんど変化せず、伝導遅延の追加やバッチ処理を行っても実行時間はわずかに増加するのみであったため、パラメータセットのバッチ処理にかかるコストは、単一のシミュレーションとほとんど変わらない。 したがって、従来は処理が困難だったパラメータスイープ、応答曲面の探索、および 感度解析が実用化されるようになったほか、後述する(展望)フィッティング手順も同様に実用化された。
決定論的/確率論的の切り替えによりソルバーのファミリーが選択されます。決定論的実行では、フォワード・オイラー法、Heun法、 古典的な4次ルンゲ・クッタ法、あるいは適応型Tsit5およびドーマンド・プリンスの時間積分法を使用できますが、 確率論的実行では、オイラー・丸山法、確率論的ヒューン法、あるいは高次分割ルンゲ・クッタ法を用いて加法ノイズを処理します。 確率モードを選択すると、ノイズのスケーリング係数も表示されます。
モニタリングは時間離散化ステップから切り離されているため、数値積分を変更することなく、領域ごとの発火率、皮質ソースの活動、 および電極電圧を低レートで記録することができます。 シミュレーションは、デフォルトで 32 ビット精度を使用しますが、検証や感度解析のために 64 ビットオプションも利用可能です。
V10.0の新機能。V10.0では、構造およびダイナミクスから、 刺激結合を経てEEG投影に至るフォワードパイプラインに加え、事前定義されたモデルセット、調整可能なパラメータ、およびSim4Lifeのフィールドソルバーへの直接 リンクが提供されます。
今後の展望。パーソナライゼーションに対応した2つの拡張機能が現在準備中です。 画像ベースのモデル生成機能は、被験者のT1強調画像および 拡散磁気共鳴画像法(MRI)スキャンから、頭部モデル、皮質メッシュ、構造的接続性、およびリード場を構築し、 刺激場、ネットワーク、およびシミュレーションされた EEGがすべて被験者の解剖学的構造を反映するようにします。 EEGに基づくパラメータフィッティングでは、ベイズ最適化を用いて、 シミュレーションされたEEGが被験者の記録を最もよく再現するようになるまで、ニューラルマスパラメータを調整します [5]。 この種のフィッティングには膨大な数のフォワードシミュレーションが必要であり、そこがBraiNNの処理速度が最も重要となる点である。 これらの拡張機能により、てんかん焦点マッピング[3]で実証されたパーソナライゼーションが、 脳刺激の分野にも応用されるようになった。
BraiNNは、全脳のダイナミクスと刺激を研究するための研究ツールであり、その結果は 前述のモデリングの仮定を踏まえて解釈されるべきである。プレプリント[5]では、その手法について 詳細に説明されている。Sim4Life V10.0は、このエンジンを 仮想集団 や画像ベースの頭部モデル、電界シミュレータ、可視化、解析機能と統合しています。これにより、解剖学的構造の抽出、電界計算、 ネットワークモデリング、および仮想EEGの生成が、単一のSim4Lifeプロジェクト内で完結し、複数のツールを併用する際に生じがちな 互換性やバージョン管理の問題を回避できます。
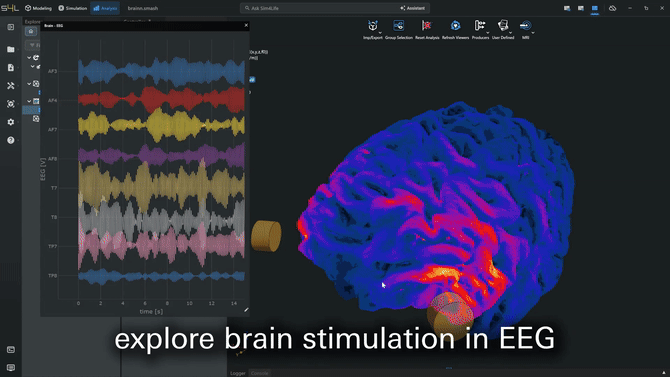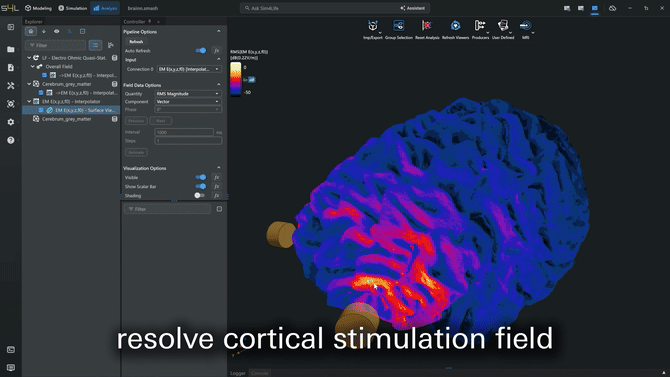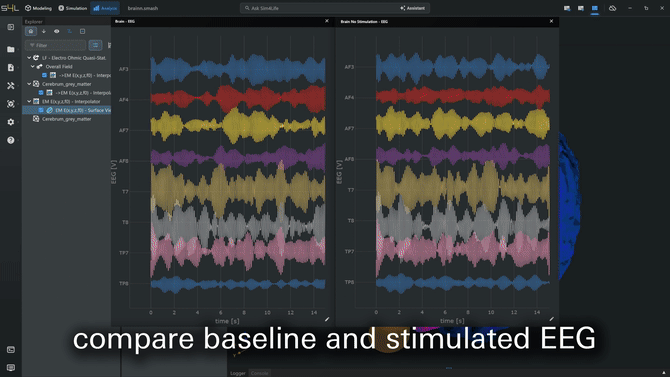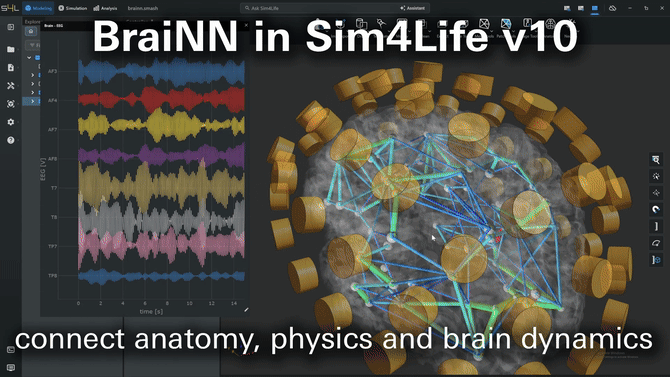 BraiNN:刺激場からシミュレートされたEEGへ。
参考文献
[1] Sanz Leon P, et al. The Virtual Brain: A simulator of primate brain network dynamics. Front Neuroinform. 2013;7:10.https://doi.org/10.3389/fninf.2013.00010
[2] Jirsa VK, et al. On the nature of seizure dynamics. Brain. 2014;137(8):2210-2230.https://doi.org/10.1093/brain/awu133
[3] Wang HE, et al. 薬剤抵抗性てんかきにおける脳画像データと個別化モデリングを用いたてんかん原性ネットワークの解明. Sci Transl Med. 2023;15(680):eabp8982.https://doi.org/10.1126/scitranslmed.abp8982
[4] Wang HE, et al. てんかん治療における刺激療法のための仮想脳ツイン. Nat Comput Sci. 2025;5(9):754-768.https://doi.org/10.1038/s43588-025-00841-6
[5] Fasse A 他. BraiNN:臨床的に実現可能な個別化全脳ネットワークモデリングのための最新シミュレータ. bioRxiv. 2026.https://doi.org/10.64898/2026.07.08.737156
[6] Jansen BH, et al. 結合した皮質カラムの数理モデルにおける脳波および視覚誘発電位の生成. Biol Cybern. 1995;73(4):357-366.https://doi.org/10.1007/BF00199471
[7] Molaee-Ardekani B 他. 経頭蓋直流刺激(tDCS)が皮質活動に及ぼす影響:計算モデルによる研究. Brain Stimul. 2013;6(1):25-39.https://doi.org/10.1016/j.brs.2011.12.006
[8] Merlet I 他. 振動性経頭蓋電流刺激から頭皮脳波の変化へ:生物物理学的および生理学的モデリング研究. PLoS ONE. 2013;8(2):e57330.https://doi.org/10.1371/journal.pone.0057330
[9] Kunze T 他. 経頭蓋直流刺激が安静時機能的接続性に及ぼす変化:大規模脳ネットワークモデリング研究. NeuroImage. 2016;140:174-187.https://doi.org/10.1016/j.neuroimage.2016.02.015
[10] Ableidinger M 他. JansenおよびRitのニューラルマスモデルの確率的バージョン:解析と数値計算. J Math Neurosci. 2017;7:8.https://doi.org/10.1186/s13408-017-0046-4
[11] Plonsey R. 体積伝導体および心電図(ECG)への互恵性の適用. IEEE Trans Biomed Electron. 1963;10(1):9-12.https://doi.org/10.1109/TBMEL.1963.4322775